감성이론
정서를
엄격한 생리학적 용어로 분석하고자 하는 이론가는 정서적 경험을 제한된 생리학적 반응에 국한 시킨다. Paul Eckman은 두려움, 분노, 행복, 역겨움, 놀람, 슬픔, 등 여섯가지의 보편적인 정서를 주장한다. 1872년 Charls Darwin은 정서와 정서의 표현양식은 진화에 의해 형성된 생물학적 특징이며, 정서는 동물의 생존을 위해서 대단히 중요한 기능을 가진다고 주장. 동물과 인간이 유사한 정서의 안면 표현양식을 가짐을 지적하였다. 감성이란 감성요인(Emotional factor)에 의하여 나타난 ‘정신적 상태’중의 하나이다. 감성의 이해를 위해서는 뇌의 상태(Brain State) 또는 정신적 상태(Mental State)에 대한 전반적인 이해가 있어야만 할 것이다. 감성은 감각(sensation), 인지(perception), 의식(consciousness)과는 다른 뇌의 기능이라고 보는 것이 타당할 것이다. 다음에는 먼저 감성이론과 관련된 다소 오래된 이론들을 간단히 정리한다.1. James-Lange 이론(1884년)
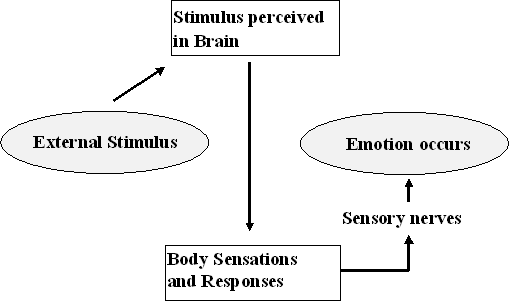
William James
와 Carl Lange에 의해 제안되었으며, 감성(정서, Emotion)이란 자율신경계를 각성시키는 사태에 대한 신체의 생리적 반응을 우리가 감지한 결과라는 것이다. 교감신경계의 각성이 일어나지 않으면 감성 경험도 없다는 것을 주장한다.
James-Lange
이론에 대한 반론.2. Cannon-Bard이론(1929년)
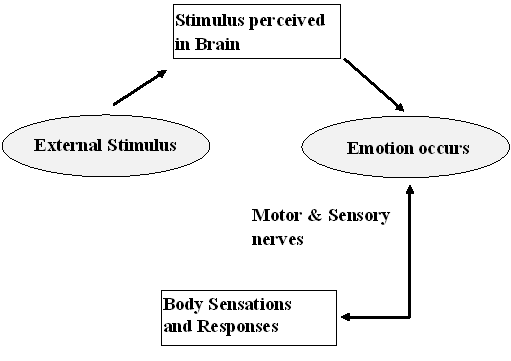
정서유발상황이
시상(Thalamus)을 자극하고 그 후 정보가 두 방향, 즉, 자율 신경계를 통과하여 신체내부기관으로의 하부 방향과 대뇌피질로의 상부로 전달된다. 자율신경계는 말초적 생리적 각성을 일으키고, 대뇌피질은 주관적 정서경험을 한다고 주장한다.
3. Papez Circuit(1937년)
정서경험에
주요한 부위로 변연계(limbic system)을 제시하고 정서란 어떤 국소 영역이 아닌 회로로 봐야 함을 주장한다.변연계의
-
편도체 amygdala - 후각계와 직접적 연결.-
해마 hippocampus-
변연피질 limbic cortex-
중격 setpum, septal area변연계는
thalamus, hypothalamus, cerebral cortex와 연결 되어있음.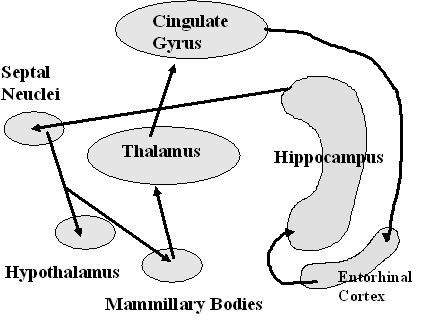
4. 인지적 - 생리적 각성이론(1962년)
Stanley Schachter
와 Jerome Singer의 정서의 이중요소이론으로, 정서가 유발되기 위해서는 일반적 자율신경계의 각성과 그러한 각성에 대한 인지적 해석이 모두 필수적이라는 주장이다.감성과
뇌1. 감성과 뇌 조직
감성은 그 원인제공이 비록 외부적인 자극에 의하며 기본적으로 감각(Sensation) 단계를 거쳐야만 한다. 감각이란 단순히 자극에 의해 발생되는 직접적인 정성적 경험을 지칭하는 말이며 따뜻하다, 차다, 빨간색이다 등과 같이 인식의 가장 처음에 있는 것이다. 이러한 감각은 그 수용기는 말초에 있지만 그 신호가 뇌에 도달하여 감각이란 것도 생긴다. 한편 감성이란 것이 감각보다는 빨리 이뤄질 수가 없다. 즉, 감성은 감각신호 후에야 발생하는 것은 자명하므로 분명히 뇌의 어딘가에서 감성을 담당하는 부분이 있을 것임을 추측하는 것은 어려운 일이 아니다. 노출된 동물의 뇌를 실험대상으로 하여 전기자극 실험을 한 결과 인위적으로 동물들에게 감성을 유발할 수 있음은 잘 알려져 있다. 이들 실험결과를 정리하면 다음과 같다.
뇌와 감성간의 관련성은 계속 연구가 지속되고 있으며, 주로 뇌의 어느 부위를 전기자극하면 어떤 감성을 보이는지에 집중되었었다. 그러나 문제는 남아 있다. 만약 편도체를 전기 자극하였을 때 공포를 느꼈다고 해서, 공포를 느낄 때 편도체가 활동을 할 것인지는 알 수 없는 문제이다. 이에 대한 답은 “그렇다” 라는 것이 최근에 제시되고 있는데 이들 실험은 PET, f-MRI등의 첨단 뇌기능 계측기 등에 의해 밝혀지게 되었다. 현재 어느 정도 받아들여지고 있는 기본 감성 종류에 대응하여 활성화 되는 뇌 영역을 정리하면 다음과 같다.
2.감성과 신경전달물질
뇌신경세포에서 분비되는 신경전달물질 또한 감성에 영향을 주게 되는데 보통 지속적이며 글로벌한 특성을 갖는다. 이는 신경세포에서와 같이 국부적인 해부학적인 특성을 보이지는 않는다. 크게 노르에피네프린과 도파민이 대포적이며 다음에 정리한다.
노르에피네프린은 적은 경우에 우울증(depression)을 유발하며 많은 경우에는 심한 스트레스 반응성을 보인다. 즐거운 느낌의 발생에 부분적인 역할을 담당하는 것으로 보이며 흥분과 각성의 기본 수준을 결정한다. 해부학 적으로 NE뉴런은 청반(locus ceruleus)이라는 뇌간의 작은 핵에 있고, 배측속(dorsal bundle)이라는 신경로가 뇌의 거의 모든 상위영역으로 투사한다.(소뇌, 시상하부, 시상, 대뇌피질, 해마, 중격, 기저핵, 편도체 등으로 직접 연결. )
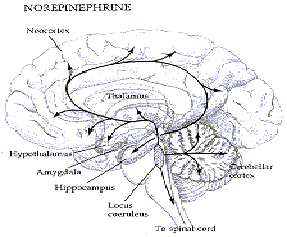
2) Dopamine
도파민은 즐거운 느낌을 보강한다. 적은 경우는 파킨슨씨병에 걸리며 많은 경우 정신분열증을 보인다. 해부학적으로 다음과 같이 3가지의 주요한 DA 회로가 있다.
특히
전두엽, 중격, 변연피질의 일부인 후내피질로 투사. 후내피질은 해마로 뉴런을 투사하는 주요원천이다.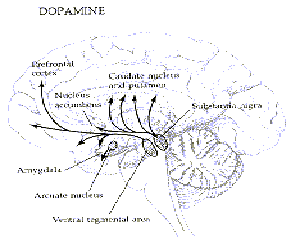
감성의
표출방식1. 즐거움과 안면 근육
안면
근육의 움직임을 담당하는 Facial Nerve Nucleus는 정보를 다음과 같이 두 가지 경로를 통해 전달받는다.1) Pyramidal Motor System(Direct Pathway)
cortical(Motor Cortex
의 얼굴부분) 지역에서 시작하며 자발적인 안면 근육 운동을 담당한다.2) Extrapyramidal Motor System(Indirect Pathway)
Noncortical
지역에서 시작하며 감정적인 안면 근육 운동을 담당한다.따라서
, 기쁘고 즐거워서 웃는 것과 가장되고 꾸며진 미소는 그 신경경로가 다르다.2. 감성과 자율신경계
공포
(fear)나 격분(rage) 등은 뇌에 의해 각성(arousal)을 일으키나, 그 표출은 자율신경계(교감신경)에 의해서 나타난다. 교감 신경계는 “전투 아니면 도망”을 위한 준비를 한다. 반대로 부교감 신경은 몸의 에너지를 보존하는 역할을 한다.교감신경
활성 상태 나열기작
: 심장에서는 심박과 심박출량 증가, 내장과 피부, 신장의 혈관을 수축.1)
기관지 : 확장 ---> 근육, 심장, 뇌 산소공급 원할.이는
매우 빠른 것으로 보이지만, 실제의 위급한 상황 등을 보면, 모든 사건이 종료된 후에 자율신경계의 반응을 경험할 수 있다(예를들어 급제동의 경우).이러한
시간 지연은 감각 수용기에서의 정보가 뇌로 갔다가 다시 되돌아오는 경로가 직접적이기 때문이다.감각기의
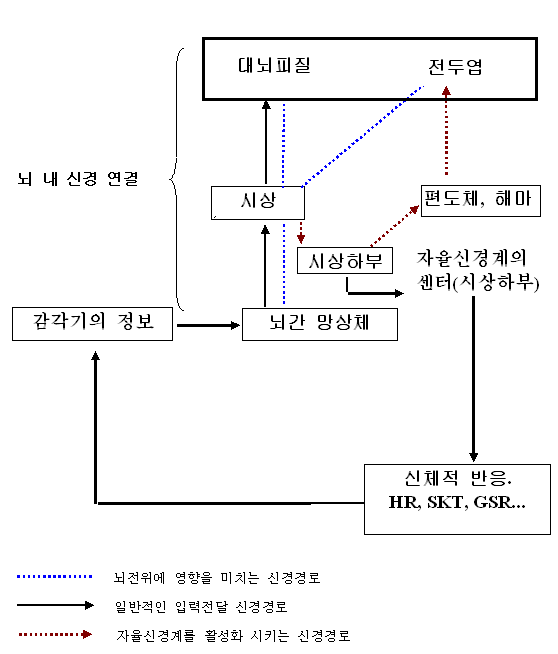
정보 -> 뇌간 망상체(reticular formation) -> 시상(thalamus) -> 대뇌피질(cortex) -> 판단 -> 행동.시상
(thalamus) - 시상하부(hypothalamus) - 편도체(Amygdala)와 해마(Hippocampus) - 전두엽위의
것들이 모두 동의하면 시상하부가 자율신경계를 점화시킨다.
감성과
뇌전위감성과 관련된 뇌의 주요 조직은 중격, 편도체, 시상하부등이다. 이들 조직은 특정한 감성이 발생함과 동시에 활동하는 것으로 여겨지며, PET 등을 이용하여 실험한 결과들이 보고되고 있다. 그러나 PET는 실험의 제약이 많아 시간적으로 40초 정도의 평군값만을 측정할 수 있기 때문에 실제 응용면에서는 많은 문제점을 안고 있다. 따라서 그 대안으로써 뇌전위를 이용할 수 있을 것이다. 뇌전위 또는 뇌파는 머리 표면에서 발생하는 전기적 포텐셜이며 이것의 근원은 흥분뉴런의 세포막을 투과해 지나가는 이온들에 의해 발생하는 전류이다. 이들 신경조직은 전도성 매질에 둘러싸여 있기 때문에 뉴런에서 발생한 전류는 머리 표면에 까지 형성되어 옴의 법칙에 의해 전위가 나타난다. 뇌와 관련된 전기 현상을 최초로 발견한 것은 1875년 Richard Caton에 의해서이며, 노출된 동물의 뇌에서 전류를 검출하였다. 사람의 머리 표면에서의 전위를 처음 측정한 것은 1928년 Hans Berger에 의해서이며, 이후 많은 실험실에서 참여하여 그 측정 기술이 급속히 향상되었고, 여러 가지 해석 방법이 시도되고 있다. 뇌전위 진동을 설명할 수 있는 뉴런의 특성과 회로동작에 대한 지식이 꾸준히 늘어나고 있다. 뇌전위에서 forward problem은 이온성 전류가 어떻게 뇌전위 신호를 만드는가에 대한 것이고, inverse problem은 그 반대 즉, 뇌전위의 근원을 탐색하는 것이다. 후자가 임상 뇌파 그리고 감성에서의 문제이다. 다음 글에서는 뇌전위에 근간에 대해서 고찰한다.
1.Generator of EEG
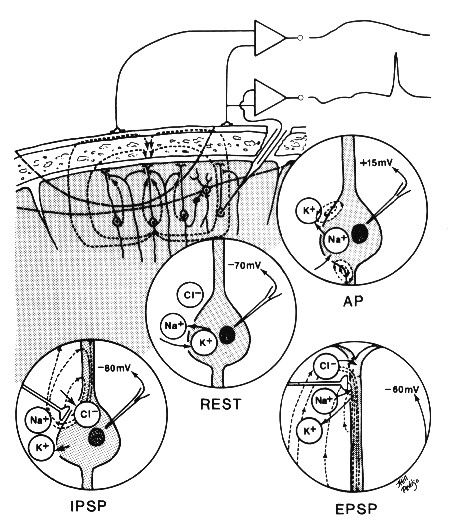
대뇌피질 Pyramidal cell의 EPSP(Excitatory Post Synaptic Potential) 와 IPSP(Inhibitory Post Synaptic Potential)가 그 주요 원천이다. 좀더 구체적으로는 대뇌회질의 피라미달 뉴런의 전류 다이폴 층들이 뇌전위 발생의 주요 근원지이다. 다이폴이란 전류의 source와 sink가 서로 인접하여 있는 것을 지칭한다. 다이폴의 한쪽 끝에서 Na+ , Ca2+ 가 흡수되는 sink와 그 반대 편에서는 전류가 방사되는 source가 있다. 피라미달 뉴런 주변의 전기장은 다이폴에 의한 분포를 따르게 되는데, 이는 그 세포의 모양이 한 방향으로 길게 생겼고 시냅스 접촉이 각각의 말단으로 분리되어 있기 때문이다.
체전도이론 (Volume conduction theory)으로 세포 외 영역으로 흐르는 전류 (발생기에서 멀리 떨어진 두피 등에서 측정되는 전류도 포함)를 기술한다. 체전도에 대해서 수학적으로 매우 복잡한 접근법이 있긴 하지만, 입체각 이론 (Solid angle theory) 이 좀더 쉽고 직관적인 접근이 가능하여 피질의 발생기로부터 두피상에서 나타날 신호에 대한 정성적인 예측을 하기에는 유용하다. 입체각이론은 다음과 같이 요약할 수 있다.
"
다이폴 층에 의해 발생된 측정점에서의 전위는 발생기자체의 전위와 측정점에서 보이는 다이폴 층의 입체각에 비례한다."두피에서 측정되는 뇌전위는 활동전위 (Action potential)가 아니라 시냅스후전위 (Postsynaptic potential)에 의해서 나타나는 것이다. 진폭은 활동전위가 더 크긴 하지만 시냅스후전위는 상대적으로 긴 시간 동안 출현하고 더 넓은 막 표면적을 지니고 있어서 시간적, 공간적인 중첩이 잘 나타난다. 이에 반해 활동전위는 상대적으로 작은 막 표면적을 지니고 있기 때문에 입체각이 매우 작게 된다. 또한 활동전위의 지속시간은 시냅스 후전위보다 10-30 배 정도 짧기 때문에 시간적, 공간적 중첩이 되기 위해서는 밀리 초 이하의 수준에서 거의 완벽한 동기화 (synchronization)가 되어야만 가능하다. 또한, 시간적 동기화와 일치 (coherence)는 주파수와 진폭의 관계를 설명하는데도 사용된다. 높은 주파수의 활동성은 낮은 주파수보다 진폭이 작다. 델타파는 1/4 - 1/2 초 정도의 지속시간을 보이고 있는데 비록 발생기가 동기화에서 10% - 30% 정도 어긋나도 동일한 시간동안 발생기면의 많은 부분이 상대적으로 동기화되어 있기 때문에 큰 진폭을 나타내게 된다.
뇌전위 신호의 진폭, 모양, 주기등에 영향을 주는 요소로는 (1) 발생기와 측정 전극간의 거리 (2) 시냅스후 전위의 주기 (3) 동기화되어 발생하는 시냅스후 전위의 개수 (4) 피라미달 세포층의 해부학적인 방향 등이 있다.
2 Rhythmical EEG Activity
동물실험에
의해 밝혀진 뇌 전위의 근간.위의
결과들을 종합하면 EEG의 진동 특성은 시상의 Pacemaker cell에 크게 의존함을 추측할 수 있다.Pacemaker Theory - Andersen & Anderson
에 의해 제안된 이론(1968년).시상의
ThalamoCortical Relay(TCR) Neurons 과 Inhibitrary interneurons 이 Rhythmical EEG Activity에 결정적인 영향을 준다.이후의
연구에 의하면 시상과 피질의 좀더 복잡한 상호작용이 EEG rhythm에 관여함도 밝혀졌다.Pacemaker Theory
의 반론.
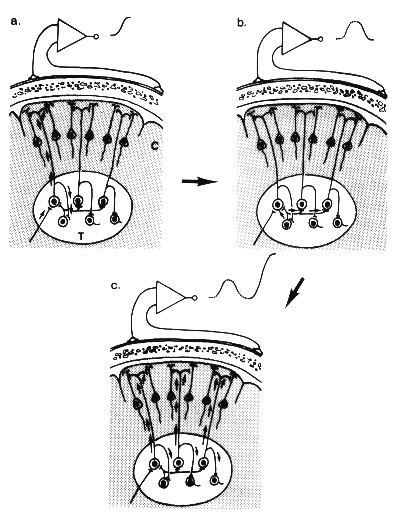
알파파와 sleep spindle 의 유사성 때문에, sleep spindle 을 이용하여 알파파를 많이 연구하였다. 그러나 비록 주파수 상에서 이들이 중첩되어 있긴 하지만 이들은 엄밀히 다른 근원을 갖고 있다. 1942년에 Morrison과 Dempsey는 시상에서 ventromedial nuclei와 centrolateral nuclei를 반복 자극하면서 대뇌피질의 반응을 관찰하였는데, 피질 전반적으로 sleep spindle 과 유사한 퍼형을 발견하였다. 이를 바탕으로 slpeep spindle은 medial thalamus에서 기인한 것으로 가정하고 있다. 이런 시상-피질 반응의 주요 장소가 시상측에 있는지 피질에 있는 것인지는 명확하지 않다. 현재로써는 nucleus reticular thalami 의 뉴런들이 spindle 의 페이스메이크로 생각되고 있다. 이들 핵은 시상은 둘러싸고 있는 GABA성 뉴런들이며 thalamocortical relay 세포로 주기적으로 입력을 주어 100-150 ms의 감분극이 생기게 한다. TCR 세포가 ?85mV 까지 감분극 되면 Ca2+ conductance 의 임계치가 낮아지게 되어 활동전위가 발생한다. 이러한 억제후발화 (postinhibitory rebound burst)가 대뇌피질에 동기화된 흥분성 시냅스 후전위를 만들고 있다.
개와 원숭이에서 알파파는 시상-피질 coherence보다 피질-피질 coherence 가 훨씬 크게 나타난다. 사람에게 있어서 피질-피질 연결과 시상-피질 연결의 밀도비가 최소한 20 : 1 정도로 피질-피질 연결이 훨씬 많다. 알파파 발생에서는 피질간의 수평적 연결이 시상-피질 보다도 중요하다. 알파파는 피질영역에 근원지를 가지면서 발생한다. 세부적인 세포수준의 메커니즘은 잘 알려져 있지 않다.
3.뇌간 망상체(Reticular Formation)가 뇌전위 리듬에 미치는 영향.
뇌간 망상체는 모든 sensory system과 피질 영역에서 신호 입력을 받고, 피질의 모든 영역으로 출력을 보낸다(피질로의 직접적인 연결도 있고 간뇌를 경유한 연결도 있다 ). 뇌간 망상체는 직접적으로 피질의 뉴런에 작용 할 수도 있고, 시상의 뉴런에 작용하여 EEG rhythm을 변화시킬 수 있다. 뇌간망상체의 활동을 강하게 하든 약하게 하든 rhythmical cortical activity를 없앤다.실제 사람의 경우에도 놀람, 집중이나 졸음, 수면 등이 rhythmical cortical activity를 없앤다. 뇌간 망상체가 파괴된 경우에는 rhythmical slow wave가 출현한다.
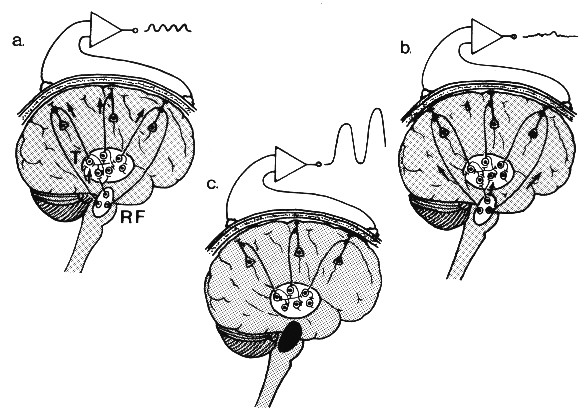
시상과
대뇌피질의 연결섬유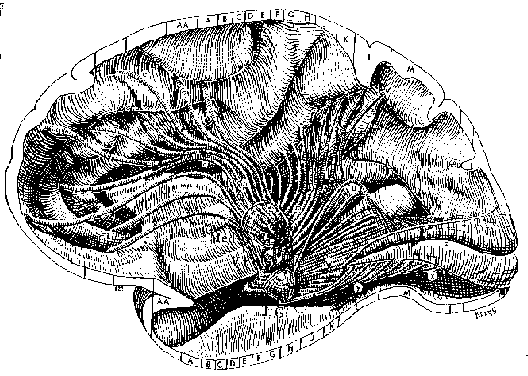
감성에
의한 시상의 반응은 대뇌피질로 투사되고 뇌 전위에 흔적을 남길 것이다.신경계
감성 검출 모형요약하면 감성은 크게 자율신경계와 중추신경계를 통하여 신체 반응을 나타낸다. 보통 해부학적으로 자율신경계와 중추신경계를 개별적으로 다루고 있지만, 자율신경계를 점화시키는 영역이 시상하부에 있고, 자율신경계를 점화 시키기 위해서는 앞에서 살펴 보았듯이 다음과 같은 뇌 신경 경로가 필요함을 알 수 있다.
감각기의
정보 -> 뇌간 망상체(reticular formation) -> 시상(thalamus) -> 시상하부(hypothalamus) -> 편도체(Amygdala)와 해마(Hippocampus) -> 전두엽위의
것들이 모두 동의하면 시상하부가 자율신경계를 점화시킨다. 자율신경계의 반응시간은 대략 1-2초 정도이다.한편, 감성 측면에서 보면 자율신경계의 반응은 너무 거시적이고, 세밀함이 결여되어 있다. 즉, 어떠한 이유로 교감신경계가 일단 활성화 되어버리면 다음의 반응이 동시 다발적으로 생긴다. 따라서 자율신경계의 반응의 측정에서 얻을 수 있는 것은 극단적인 감성 상태가 될 것이다. 그러나, 위의 교감신경계의 정보의 흐름 경로를 보면 매우 중요한 점이 뇌 조직의 많은 부분을 휩쓸고 지나간다는 것이다. 즉, 이는 비록 자율신경계의 최종 신체 반응으로는 세밀함이 얻어질 수 없다고 하더라도, 다양한 부위의 뇌 신경계를 지나가기 때문에 뇌 신경계의 측정을 통해서 감성을 세밀하게 측정할 수 있는 가능성이 있다. 문제는 뇌전위에 어떤 변화를 줄 것인가가 중요한데 앞에서 고찰 해본 바와 같이 주파수의 변조가 가장 큰 효과가 될것이다.
뇌전위에
영향을 주는 신경경로