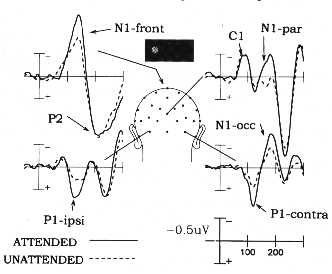
[그림1]17명 피험자에 대해 좌측으로 주의집중을 하도록 지시한 후, 좌, 우측에서 무작위적으로 자극을 제시하였을 때의 ERP를 나타낸다. 점선은 피험자 가 주의집중을 하지 않았을 때이고 직선은 주의집중을 한 때의 ERP이다. 공간 적 위치에 대한 주의집중은 N1,P1피크의 진폭을 변화시킴을 알 수 있다. 반면 에 C1피크는 아무런 변화가 없다.
시각 영역의 배쪽 부분은 대상의 모양을 코딩하며 등쪽 부분은 대상의 움직 임을 코딩하는 기능을 한다. 다시 말해서 제어회로는 시각 경로에서 감각자극 을 강화 또는 억제시키는 "bias signals" 을 제공하는 셈이다. 또 다른 측면 으로 크릭(Crick)은 공간적인 주의집중(spatial attention)에서의 제어회로 는, 시상에서 대뇌피질로의 입력을 선택적으로 modulate하기 위해 시상의 reticular/perigeniculate nuclei를 경유하여 작동한다고 제안하였다. 만약 이러한 기작이 genicular-striate투사시에 시각 신호의 전달과정을 제어한다 면 주의집중하는 동안 일차 시각피질에서의 짧은 시간의 acitivity가 modulate 된다.
이는 공간적 주의집중이 자극이 주어진 후 80-200ms사이에 시각 경로에서 의 감각정보에 대한 선택적인 증폭 조절 역할을 함을 암시한다. 이러한 증폭기 작은 집중한 방향으로 부터의 시각자극에 대한 신호대잡음비(SNR)을 개선시킨 다. P1,N1의 진폭 증가현상 공간적 주의집중의 일반적인 특징으로 보인다. 강화 된 P1,N1진폭은 시각자극에 대한 반응시간의 단축과 자극의 정확한 감지 정도 와 밀접하게 관련되어 있었다. 이는 ERP진폭의 조정이 인지적인 판단에 사용되 는 감각정보를 반영한다는 가설을 지지한다. 비슷한 P1,N1조정은 대상의 색깔 과 배열에 집중해야하는 대상찾기 과정에서도 발견되었다. 대조적으로 C1은 주 의집중과는 상관없이 변하지 않았다.
[그림1]17명 피험자에 대해 좌측으로 주의집중을 하도록 지시한 후, 좌,
우측에서 무작위적으로 자극을 제시하였을 때의 ERP를 나타낸다. 점선은 피험자
가 주의집중을 하지 않았을 때이고 직선은 주의집중을 한 때의 ERP이다. 공간
적 위치에 대한 주의집중은 N1,P1피크의 진폭을 변화시킴을 알 수 있다. 반면
에 C1피크는 아무런 변화가 없다.
C1, P1을 발생시키는 시각경로의 해부학적 부위를 연구하려는 많은 시도가 있었다. C1은 midline occipito-parietal부분에서 보여지는 데 이는 일차 시 각피질에서의 dipole source에 의해서도 잘 설명되는 부분이다. 더군다나 C1 의 경우 레티나에서 calcarine cortex로의 위, 아래부분으로의 맵핑에 일치하 여 dipole의 극성을 바꾼다. 대조적으로 P1은 자극의 위치에 따라 다이폴의 극성을 바꾸지 않으며 P1의 발생원은 후두엽의 ventral-lateral extrastriate cortex의 fusiform gyrus에 있는 다이폴 소스에 의한 것으로 조 사되었다. 이는 Heinze와 그의 동료들에 의한 ERP와 PET의 실험에 의해서도 그 림2와 같이 확인되었다. 그들은 같은 피험자와 같은 시각자극에 대해 ERP에 의 한 dipole소스찾기와 PET에 의한 혈류량변화 부위를 찾아서 서로 비교하여 잘 일치함을 확인하였다.
주의집중에 의한 P1의 특성은 "early selection" 이론에 강한 증거를 제시 한다. 즉 감각입력이 감각 인지(identification)에 앞서 감각 지각 (perception)과정 중에 주의집중에 의해 선택적으로 조정된다는 사실이다. 따 라서 공간적 주의집중은 대상이 무엇인지에 상관없이 그것의 위치에 따라 훨씬 앞선 단계에서 입력이 조정된다. N1의 발생원에 대해서는 그다지 알려진 바가 없다. 그럼에도 불구하고 P1과 비교하여 N1은 주의집중된 위치가 아닌 위치에서 의 시각정보를 약화시킨다는 사실은 ERP실험을 통해 확인되었다. 이러한 ERP실 험에 의해 밝혀진 사실들은 공간적 주의집중이 강화와 억제의 두가지 기작과 관 련되면 이들 각 기작은 시각 경로의 다른 레벨에서 이루어짐을 제시한다.
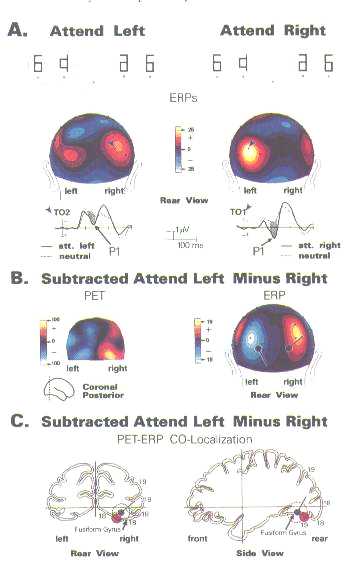
[그림 2]A:왼쪽, 오른쪽에 있는 대상에 대해 주의집중을 시켰을 때 후두엽
의 반대반구의 ERP에서 P1의 진폭이 강화되었다. B:같은 실험에 대해 PET에 의
한 활성화된 부위(좌측그림)와 왼쪽에 집중한 ERP신호에서 오른쪽에 집중한
ERP신호를 뺀 신호에서 찾은 다이폴의 위치(우측그림)를 보여준다. C: PET와
ERP에서 공통으로 활성화된 부위인 posterior fusiform gyrus를 나타낸다.
SN은 머리표면의 뒷부분인 visual cortex에만 분포한다. 반면, selection positivity(SP)라 일컫는 작은 양의 전위가 SN과 비슷한 시점에서 머리표면의 앞부분에 분포함을 알 수 있다. 색깔에 대한 집중 반응이 가장 빨리 반영된 것 이 parietal-occipital cortex에서 130ms후에 나타난 PD130이라 일컫는 약한 양의 전위피크이다. SN의 발생원과 발생시기에 대한 연구가 최근 진행중이다. 다이폴 모델링에 의하면 대칭적인 다이폴 한쌍이 머리표면의 ERP분포에 가장 잘 일치하였다.
결과에 의하면 그림4와 같이 PD130은 dorsal-lateral occipital cortex (dipole 1,2)가 발생원이었고, 160ms에서의 SN은 collateral sulcus (dipole3,4)근처의 ventral occipital cortex이었다. 계속되는 SN의 소스부위 는 premotor cortex(190ms, dipole 5,6)를 거쳐 anterior occipito- temporal region(240ms,dipole7,8)으로 옮겨졌다. 이러한 결과는 PET, fMRI 의 결과와도 잘 일치하였다.
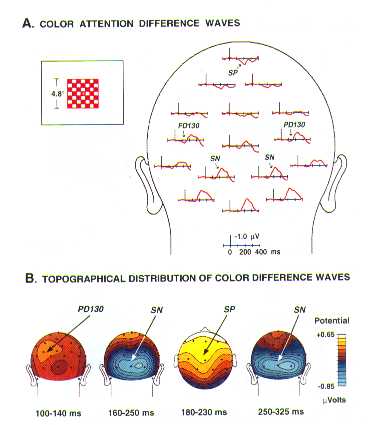
[그림 3]A: 대상의 색깔에 집중하도록 하였을 때 나타난 ERP에서의
SN,SP, PD130을 보여준다. B: PD130, SN, SP가 나타난 시점에서의 뇌전위의
등고선분포를 보여준다.
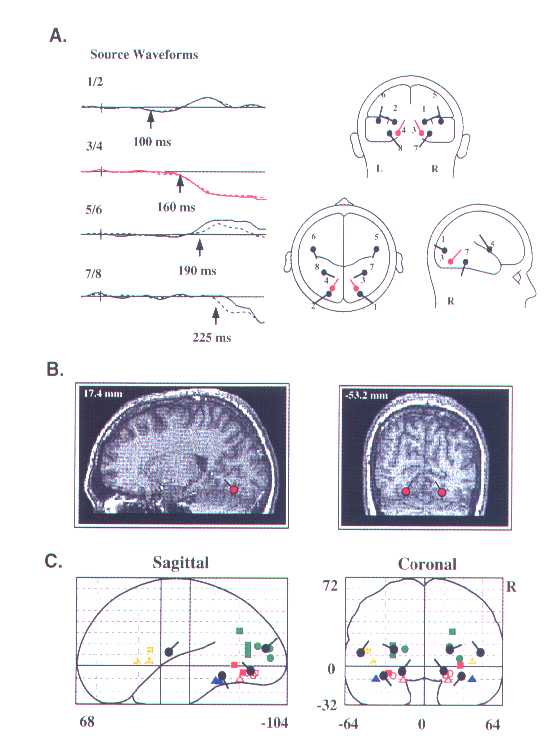
[그림 4]A: 다이폴 모델링에 의해 찾은 PD130(다이폴1,2), 160ms(다이폴
3,4),190ms(다이폴5,6), 240 ms(다이폴7,8)에서의 SN의 다이폴 소스의 위치
를 나타낸다. B:다이폴3,4의 위치를 MRI영상과 함께 해부학적으로 보여준다.
C:PET,fMRI에 의한 활성화된 부위를 다이폴 소스와 함께 표시하여 잘 일치함
을 보였다.
그림 5의 A와 같이 4개의 자극을 피험자에게 제시하였다. 대상의 위치는 왼 쪽 또는 오른쪽중의 하나, 대상의 색깔은 파랑 또는 빨강중의 하나, 각 위치에 서의 대상의 진동 운동방향은 수직 또는 수평중의 하나로 선택하였다. 피험자에 서 대상의 위치에 주의집중을 하도록 하였더니 B의 제일 윗 그림들과 같이 색깔 이나 진동운동의 양상과는 상관없이 P1,N1이 나타났다. 그 다음 자극의 위치를 고정시키고 특정한 색깔에 집중하도록 하였을 때는 그림5의 B의 중간그림과 같 이 SN이 나타났다. 자극이 움직이는 속도에 집중하도록 하였을 때는 B의 가장 아래에 있는 그림과 같이 N2, LPC(late positive component)가 나타났다. 결 론적으로 P1,N1은 자극의 공간적 위치에 대한 인식을 반영하고 SN은 그외에 색 깔,진동방향,모양등에 대한 인식을 반영한다는 것을 알 수 있다.
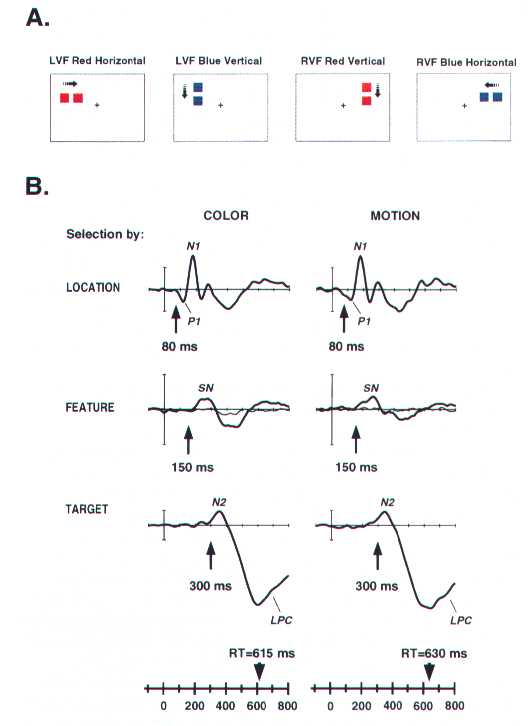
[그림 5]A:4가지의 시각자극을 나타낸다. 각 자극대상의 위치는 왼쪽 또
는 오른쪽중의 하나, 대상의 색깔은 파랑 또는 빨강중의 하나, 각 위치에서의
대상의 진동 운동방향은 수직 또는 수평중의 하나로 선택하였다. B:(가장 위)피
험자가 자극의 위치에 집중했을 때 ERP에서 N1,P1이 나타났다. (중간)자극의
색깔에 집중했을 때 SN이 나타났다. (가장 아래) 자극이 움직이는 속도에 집중
했을 때는 N2, LPC가 나타났다.